

葛增祥研究组揭示MAKR6作为枢纽蛋白调控植物生长素渠化机制
生长素在细胞间的定向运输是植物适应性发育的基础。经典“生长素渠化”(auxin canalization)理论认为,生长素由源向库定向运输,极性定位的PIN蛋白与生长素信号通过反馈调节,使生长素向特定方向汇聚并逐步形成稳定的生长素运输通道,进而决定维管发育位置。该机制是叶脉形成、维管再生和器官发生等自组织过程的共通基础。
前期研究发现,生长素信号通路中TIR1/AFB-Aux/IAA-ARF介导胞内转录响应,WRKY23作为重要转录因子参与该过程。类受体激酶CAMEL可与CANAR互作,动态调节PIN1的囊泡运输与极性。同时,类受体激酶TMK及膜蛋白TOW也参与其中。尽管如此,这些受体通路如何协同调控PIN1极性与生长素渠化过程,其分子机制仍不清楚。
2026年10月20日,中国科学院分子植物科学卓越创新中心葛增祥研究组与奥地利科学技术研究所合作,鉴定出MAKR6是连接生长素转录响应、细胞表面受体激酶信号与生长素转运蛋白PIN1极性动态的枢纽蛋白,为理解植物维管模式建成与再生的自组织过程提供机制框架。
该研究基于前期转录组分析所鉴定的生长素诱导基因,鉴定到MAKR4和MAKR6是受Aux/IAA–ARF–WRKY23模块严格调控的基因,其中MAKR6主要参与生长素渠化相关生物学过程。MAKR6的功能缺失导致叶脉形成、维管再生以及由生长素源诱导的运输通道建成出现严重缺陷。在分子调控层面,MAKR6可与PIN1直接互作,参与调控生长素–PIN1的反馈环路。此外,MAKR6同时与两组参与渠化过程的受体激酶复合体TMK1/4和CAMEL/CANAR结合,并受TMK和CAMEL的磷酸化修饰调控。遗传学实验表明,这些组分作用于同一调控网络,MAKR6通过整合上述受体信号调控PIN1的膜泡运输与极性分布。
综上,该研究揭示MAKR6作为关键整合节点,将转录层面的生长素信号、多条受体激酶通路与转运蛋白极性输出串联起来,从而精确控制生长素渠化过程。该研究为生长素渠化模型提供了新的分子机制证据,也为维管发育与再生的分子设计提供了参考。
中国科学院分子植物科学卓越创新中心葛增祥研究员为论文第一作者,奥地利科学技术研究所Jiří Friml为通讯作者。
论文链接:https://doi.org/10.1038/s41477-026-02435-0
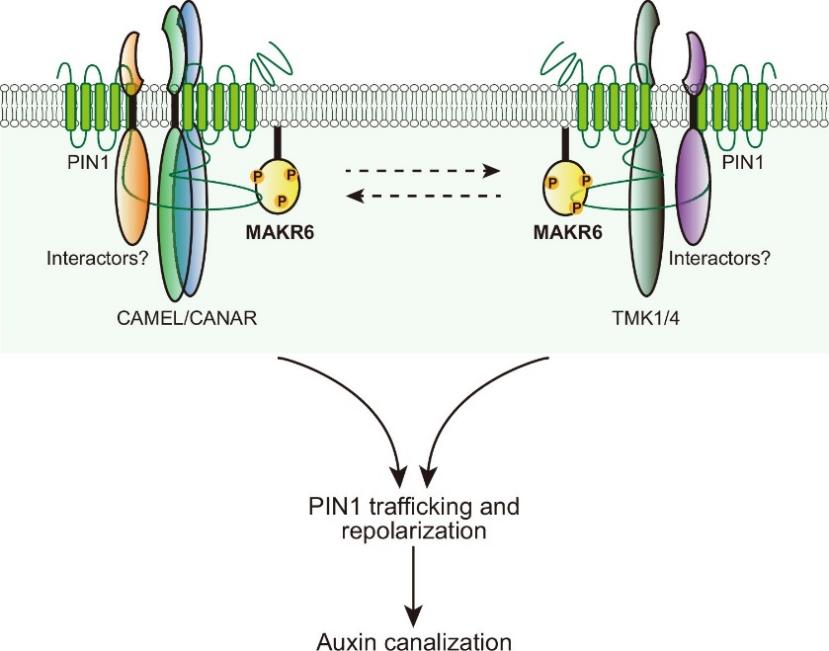
图1 MAKR6调控生长素渠化的模型示意图

Copyright © 2002-
中国科学院分子植物科学卓越创新中心 版权所有
地址:中国上海枫林路300号(200032)
电话:86-21-54924000
传真:86-21-54924015
Email: webmaster@cemps.ac.cn


